News Detail
 来源:本站
 浏览量:10007
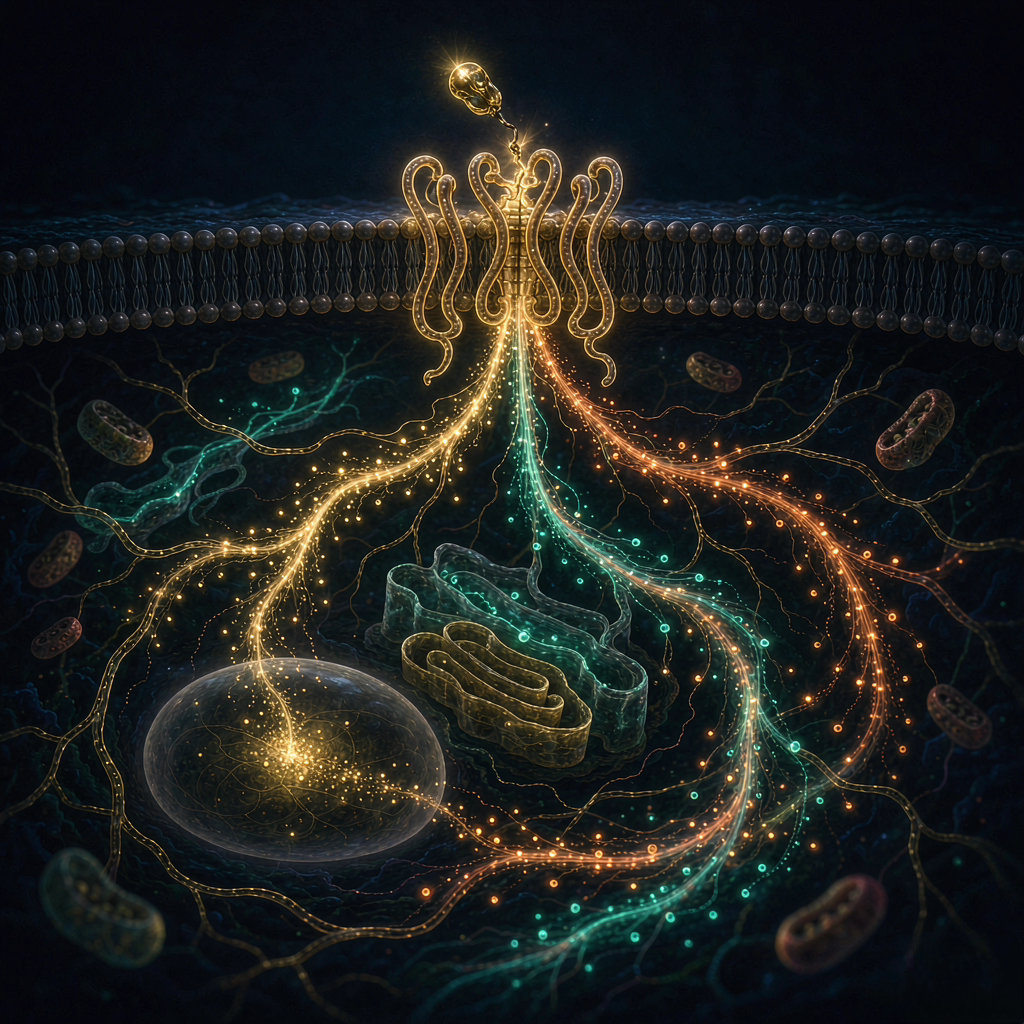
「结合」只是关,一个新分子真正的脾气,要看它结合之后干了什么——是激动还是阻断、走哪条信号通路。这就是 GPCR 功能检测要回答的问题。而功能检测的「坑」,恰恰在于 GPCR 不是走一条独木桥:同一个受体,配体结合后可能同时激活多条下游通路,测错了一条,就会误判分子的真实药理画像。
据爱思益普官网,其 GPCR 功能检测按三条层次展开:第二信使信号(cAMP、IP1、钙流、GTPγS)、通路招募(报告基因、β-arrestin 招募、pERK/pAKT In-Cell Western)、以及细胞响应(受体内化、趋化)。
先看核心的「第二信使」层,它直接对应 GPCR 耦联的 G 蛋白类型:
| 信号通路 | 对应 G 蛋白 | 检测方式 |
|---|---|---|
| cAMP 通路 | Gs / Gi | 测 cAMP 水平升高(Gs)或降低(Gi) |
| IP1 / 钙流通路 | Gq | 测 IP1 累积或细胞内钙流 |
| GTPγS 结合 | 通用 G 蛋白 | 直接测 G 蛋白被激活的程度 |
为什么「先分清 Gs/Gi/Gq」这么关键?因为同一个受体可能耦联不同类型的 G 蛋白,而激动剂、拮抗剂、甚至同一激动剂对同族不同受体的效应都可能相反。以肾上腺素 β 受体为例,它走 Gs 通路、激动后 cAMP 上升;而 α2 受体走 Gi 通路、激动后 cAMP 下降。一个分子到底是「升 cAMP」还是「降 cAMP」,直接决定了它在细胞里起什么作用。官网把 cAMP 检测归给 Gs/Gi 耦联受体、把 IP1 和钙流归给 Gq 耦联受体,正是按 G 蛋白类型把检测方法对齐。
再往上一层,是「通路招募」——它回答的是「除了 G 蛋白,分子还招募了谁」。β-arrestin 招募检测尤其关键:它读的是受体被激活后的「偏向性」信号。一个分子可能只激活 G 蛋白通路、不招募 β-arrestin(或反之),这种「偏向性激动」正是新一代 GPCR 药物追求精准疗效、减少副作用的核心。pERK/pAKT In-Cell Western 则直接读下游磷酸化信号,把「受体激活」翻译成「通路真的被点燃了」。报告基因检测则把通路活性变成可读的发光/荧光信号,适合高通量。
外层是「细胞响应」:受体内化(高内涵成像)看受体被激活后是否「内吞入胞」,趋化实验看免疫细胞是否朝趋化因子方向迁移。这两者接近「细胞真实做了什么」,是把分子信号一路推进到生理表型的关键一步。
还有一个容易忽略的层次:功能检测与结合检测是「互补」而不是「二选一」。结合数据告诉你「分子贴没贴上」,功能数据告诉你「贴上之后干了什么」。一个分子可能结合力一般、功能却很强(高效能激动剂),也可能结合力很强、功能却很弱(结合却不激活)。只有把两者拼在一起,才能完整回答「这个分子对受体到底起不起作用、起的是什么作用」。
对决策者来说,功能检测的选型逻辑是「三层递进」:先做第二信使(cAMP/钙流/GTPγS)确定分子是激动还是拮抗、走哪条 G 蛋白;再根据需要补 β-arrestin 招募看偏向性、补 pERK/pAKT 看下游信号;后用受体内化或趋化确认细胞层面的真实响应。只测结合不测功能,你会「知道它贴上了,却不知道它干了什么」;只测一条通路,你又可能「看对了 G 蛋白、看漏了偏向性」。三层叠加,才是一个分子的完整功能画像。
问:为什么要区分 Gs、Gi、Gq 通路?
因为 GPCR 耦联的 G 蛋白类型不同,激动后的第二信使就不同:Gs 升高 cAMP、Gi 降低 cAMP、Gq 升高钙流。分不清 G 蛋白类型,就可能把「升 cAMP」和「降 cAMP」两种相反的药理效应搞混。
问:β-arrestin 招募检测为什么越来越重要?
因为它能读出「偏向性激动」——分子是只激活 G 蛋白、还是同时招募 β-arrestin。偏向性激动是新一代 GPCR 药物追求「精准疗效 + 少副作用」的核心机制,单看第二信使看不到这一层差异。